 联系我们

文献导读
2025年8月4日,北京生命科学研究所陈婷团队在 Cell(IF=42.5)杂志上发表题“A mechano‑resistance mechanism in skin adapts to terrestrial locomotion”的研究论文。该研究以与陆生动物同步出现、且在掌跖表皮特异性表达的 Slurp1基因为切入点,揭示其编码的SLURP1蛋白可维持内质网(Endoplasmic reticulum, ER)钙泵SERCA2b在机械压力下的通道活性,进而调控细胞内钙离子稳态,确保表皮在巨大机械压力下维持正常的组织形态和屏障功能。
📌 研究亮点
▫️ SLURP1 是广泛存在于四足动物的内质网膜蛋白
▫️ 机械压迫导致 SLURP1 缺失小鼠掌跖表皮增生与钙稳态失衡
▫️ SLURP1 维持 SERCA2b 功能以稳定胞质钙水平
▫️ SLURP1 抑制异常的 pPERK‑NRF2 激活,从而维持表皮稳态
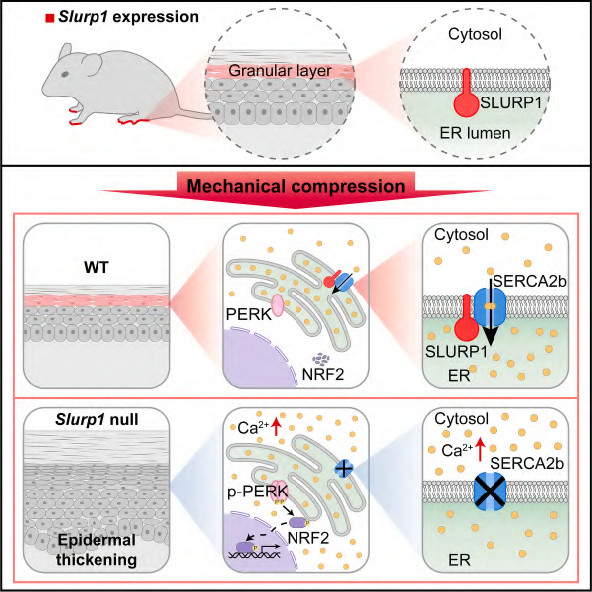
Abstract Fig. 表皮的机械力抵抗机制模型
力学信号是生物体内持续存在的物理微环境,却长期被生物学研究忽略。脊椎动物登陆演化后,躯体失去浮力缓冲,需直接承受重力负荷。掌跖作为机体承重关键界面,长期承受高频机械应力,其适应高压维持皮肤稳态与屏障的分子 机制尚不明确。
进化层面分析显示,Slurp1 基因不存在于无脊椎动物与鱼类基因组中,该基因起源于两栖类,并在四足脊椎动物中高度保守。演化规律表明,Slurp1 的生物学功能与脊椎动物登陆适应陆生环境的演化进程紧密相关。人类 SLURP1 功能缺失突变可诱发常染色体隐性遗传病 ——掌跖角化症(Mal de Meleda),该病以掌跖皮肤过度角化、表皮异常增殖为典型临床表现,与该基因在掌跖部位的特异性表达高度契合,严重损害患者行走功能,显著降低其生活质量。
▸ 掌跖皮肤如何抵御长期高强度机械压力以维持稳态?
▸ SLURP1 的真实定位与核心生理功能是什么?
▸ 机械压力如何通过 SLURP1 触发表皮病理性增生?
▸ 能否为掌跖角化病提供机制解释与可靶向通路?
为探究SLURP1 蛋白的生理作用,研究人员构建 Slurp1 敲除小鼠模型,其爪部皮肤病理表型与人类患病表型高度吻合。同时小鼠体内 SLURP1 同样呈区域特异性表达,特异性分布于爪部表皮颗粒层。进一步研究发现,Slurp1 KO小鼠皮肤表型的严重程度与爪部所承受的机械力呈正相关。
为明确机械应力在疾病发生中的作用,研究者开展单侧后肢悬吊受力干预实验:一侧后爪悬空卸载机械负荷,另一侧正常承重作为对照。结果发现,无外力负荷的后爪表皮结构正常,承重对照爪呈现典型角化异常表型;恢复肢体受力后,原本正常的悬空后爪再度出现表皮增厚病变。这一结果明确表明,机械压力驱动了Slurp1 KO小鼠表皮异常分化增厚的发生。
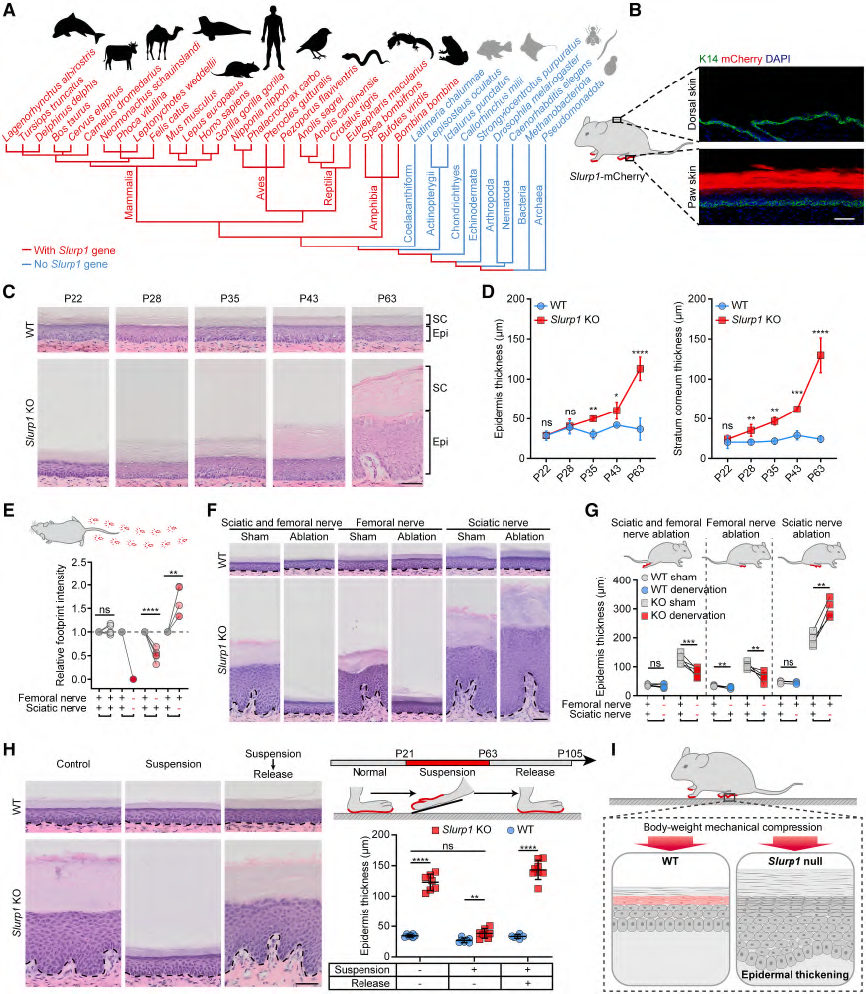
Fig1. 机械压力是Slurp1缺失导致表皮增生的必需条件
上述结果表明,SLURP1在表皮中具有抵抗机械力的功能。已知 SLURP1 属于分泌型蛋白,研究人员最初推测其通过分泌至胞外,调控细胞膜机械敏感离子通道,进而参与皮肤机械应答与稳态维持。表皮细胞特异性高表达 Trpv4、Piezo1 两类机械敏感通道,二者因此成为核心候选分子。但后续实验证实,敲除 Trpv4、表皮特异性敲除 Piezo1,以及应用小分子抑制剂干预,均未能缓解 SLURP1 缺失引发的表皮病理表型。随着这一“常规”思路的受阻,研究者开始意识到SLURP1的作用机制可能并不依赖于传统的机械敏感性离子通道。
研究的转折点在于对 SLURP1 亚细胞定位的重新解析。研究意外发现,SLURP1 除分泌至胞外外,亦可稳定定位于内质网膜上。为探究胞内定位的功能意义,研究者构建了Slurp1C65A/C65A小鼠模型,该突变可阻断蛋白胞外分泌,但其爪部皮肤表型与野生型无显著差异。结果证实,SLURP1通过其细胞内定位和作用方式,行使抵御机械压力、维持组织稳态的重要功能。该发现颠覆既往认知——作为已知具有分泌能力的蛋白,SLURP1 维持皮肤生理稳态的核心功能并不依赖胞外分泌,而是以内质网膜蛋白形式介导。
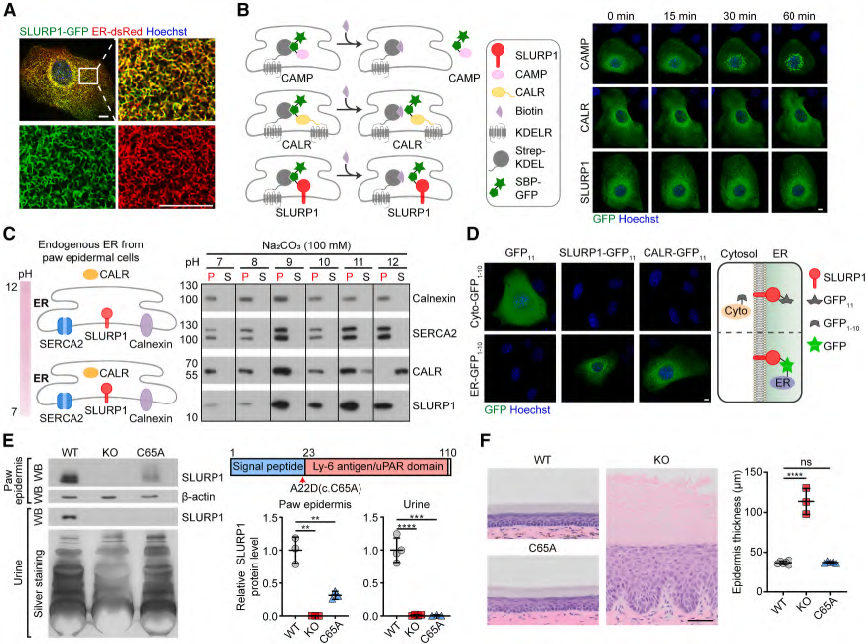
Fig2. SLURP1 通过内质网膜蛋白功能维持表皮稳态
转录组及单细胞转录组测序结果表明,Slurp1 敲除小鼠爪部表皮显著富集内质网应激、氧化应激相关信号通路。其中内质网应激关键感知蛋白 PERK 磷酸化水平显著上调,而经典 IRE1‑XBP1 内质网应激通路未发生明显活化。进一步通过后肢悬空实验去除机械力后,pPERK水平恢复正常,说明在SLURP1缺失的情况下,机械力主要诱导了表皮中pPERK的异常激活。
为探究机械应力对表皮细胞的直接作用,研究者建立了具备精准控压能力的体外加压实验系统,可通过调控气压对体外培养的表皮细胞周期性施加稳定的压力,以模拟皮肤承受的机械负荷。结果显示,体外加压可显著上调pPERK水平,而SLURP1的表达能够使其恢复至正常。
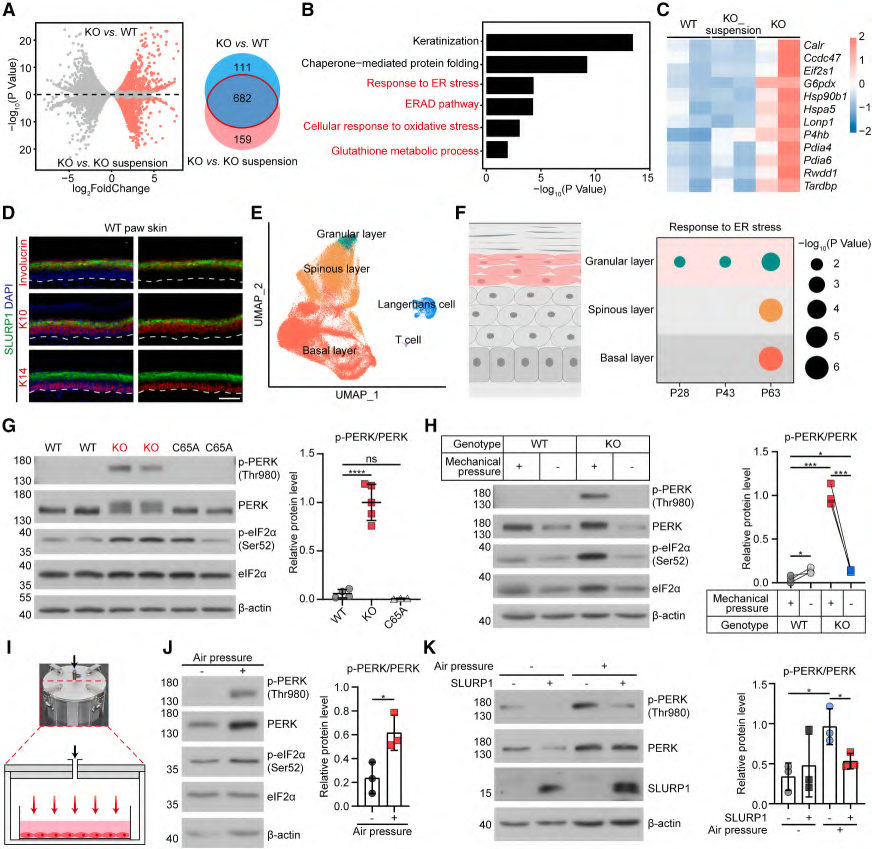
Fig3. SLURP1 拮抗机械压力诱导的 pPERK‑NRF2 异常激活
既往研究表明,PERK 磷酸化可介导转录因子 NRF2 入核,而 NRF2 持续异常活化会引起表皮分化与增殖进程,导致表皮过度增厚。本研究证实,Slurp1 敲除小鼠爪部表皮存在机械应力依赖性 NRF2 异常激活及下游靶基因上调,同时联合敲除 NRF2 可显著逆转敲除小鼠的皮肤病理表型。综上,SLURP1通过抑制机械力诱导的pPERK‑NRF2信号通路异常激活,以维持表皮稳态。
为进一步阐明 SLURP1 抑制 PERK 异常磷酸化的分子机制,研究利用重组 SLURP1‑FLAG 融合蛋白作为诱饵,结合小鼠爪部组织开展 Co‑IP 联合质谱分析,鉴定出SERCA2b为其互作蛋白。SERCA2b 为内质网膜Ca2+转运泵,可将胞质Ca2+转运至ER,维持细胞钙稳态平衡。既往研究证实胞质Ca2+过载会诱发 PERK 异常磷酸化,据此推测 SLURP1 可通过调控 SERCA2b 活性稳定胞内钙稳态,进而抑制 pPERK的上调。
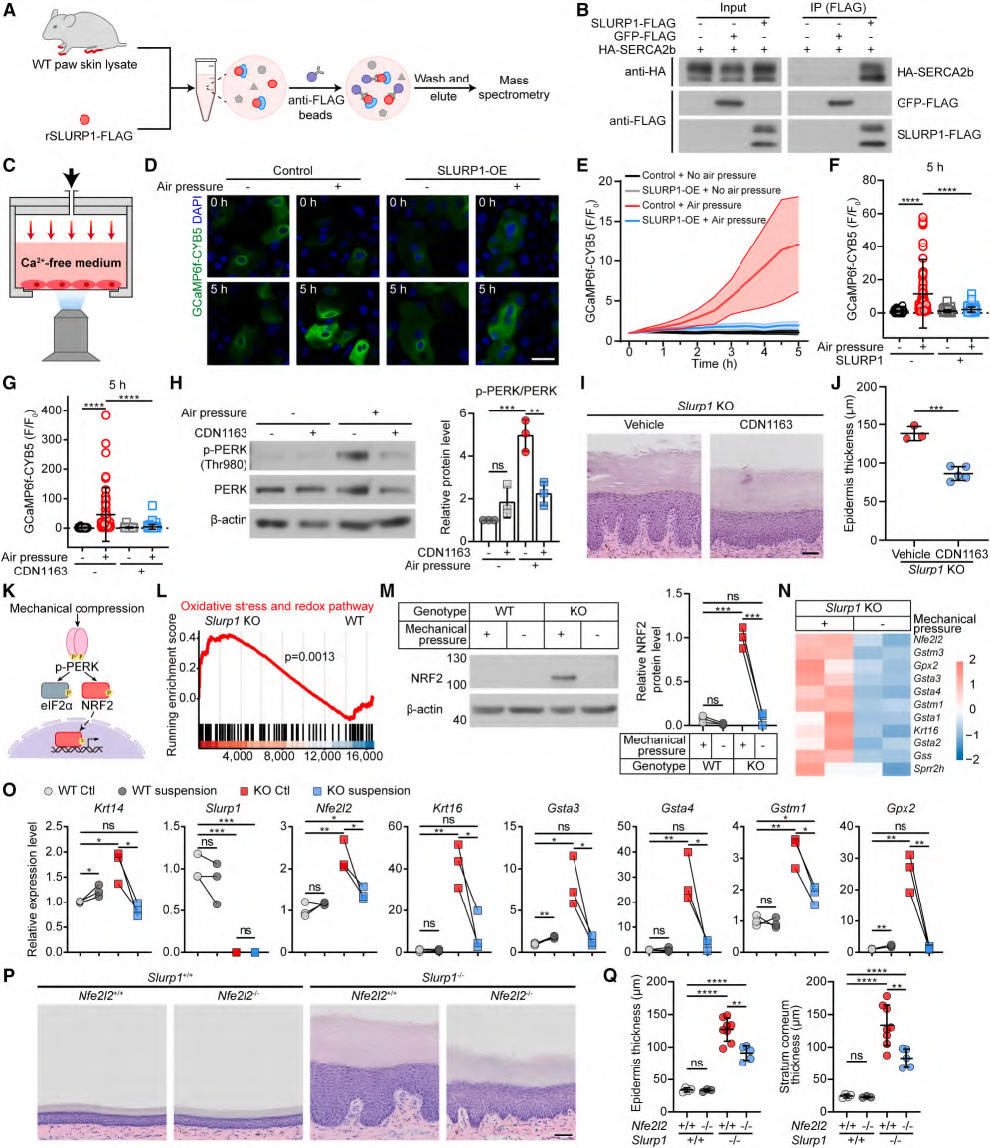
Fig4. SLURP1 结合 SERCA2b 维持钙稳态
实时钙成像结果显示:在无胞外钙环境中,机械应力刺激仍可显著升高表皮细胞胞质Ca2+水平;而SLURP1 蛋白或使SERCA2b 激动剂 CDN1163 干预后,均可显著抑制这一现象,并使 PERK 磷酸化水平恢复正常。结果表明,机械力抑制了 SERCA2b 的Ca2+转运功能,而 SLURP1 可维持 SERCA2b 正常活性。体内实验进一步证实,CDN1163处理显著减轻Slurp1 KO小鼠表皮异常增厚。
以上结果共同支持 以下机制:长期机械应力会抑制掌跖表皮 SERCA2b 钙泵功能,导致胞质内 Ca2+蓄积,进而激活 pPERK‑NRF2 信号轴,诱发表皮病理性过度增生增厚。而特异性表达于掌跖颗粒层的内质网膜蛋白 SLURP1,可在受压环境下维持 SERCA2b 正常功能,稳定胞内Ca2+稳态,从而维持表皮结构与功能稳态。
该研究揭示了皮肤中的机械阻力机制通过适应性演化支持动物在陆地生活的运动。研究团队发现了皮肤上皮细胞中存在的一种进化中形成的机制——SLURP1通过结合并维持内质网钙泵 SERCA2b活性、稳定胞质钙离子稳态,抑制机械压力诱导的 pPERK‑NRF2 通路异常激活,从而保护掌跖表皮不发生病理性增生。该发现不仅深化了对皮肤机械力响应的认识,更为“细胞器机械感应”这一新兴研究方向奠定了基础。
本研究中,用于 SLURP1‑FLAG 融合蛋白的纯化与互作鉴定的 3×FLAG peptide由强耀生物合成。强耀生物提供多肽、抗体和蛋白制备等优秀服务助力科研,欢迎咨询订购~
原文链接:https://www.cell.com/cell/abstract/S0092‑8674(25)00801‑3
 返回